|
论文信息:李金华*, 王宇钦, 刘沛余, 兰倩倩, 赵翔, Nicolas Menguy, 王建, Eric Leroy, 刘嘉玮, Rafal E. Dunin-Borkowski, Wyn Williams, Andrew P. Roberts, 朱日祥, 潘永信. Chain organization of dimple-ended magnetite magnetosomes supports field-dependent cell linking in unicellular magnetotactic bacteria[J]. PNAS, 2026, 123 (40): e2615054123. DOI:10.1073/pnas.2615054123. |
地磁场不仅参与维持地球宜居环境,也像一张覆盖全球的“坐标网”,持续为生物提供方向信息。生物如何感知并利用这一微弱信号,是生物地磁学的核心科学问题。长期以来,磁小体链被视为趋磁细菌的胞内“指南针”。然而,若单颗磁小体并非理想均匀磁化颗粒(即单磁畴,single domain),整条磁链能否稳定工作?磁作用能否跨越细胞边界?此前仍不清楚。
近日,中国科学院地质与地球物理研究所李金华研究员领衔,联合德国于利希研究中心、澳大利亚国立大学、英国爱丁堡大学、法国索邦大学及加拿大光源等机构,发现一种单细胞趋磁细菌能合成大尺寸、两端带凹坑的磁铁矿磁小体。单颗磁小体在孤立或弱约束时可呈单涡旋磁化(single vortex),即磁矩围绕中心核卷曲而非整体同向;紧密排列成链后,颗粒间强磁耦合可抑制这种局部非均匀性,使整条磁链形成稳定的轴向磁矩。在外加磁场和较高局部细胞密度条件下,细胞首先沿磁场排列,磁链端部产生的杂散场随后促进相邻细胞首尾相接。
该研究贯通了磁性颗粒、磁小体链和细胞三个尺度,表明磁小体链既可为细胞“导航”,也可成为连接相邻细胞的“磁性纽带”。
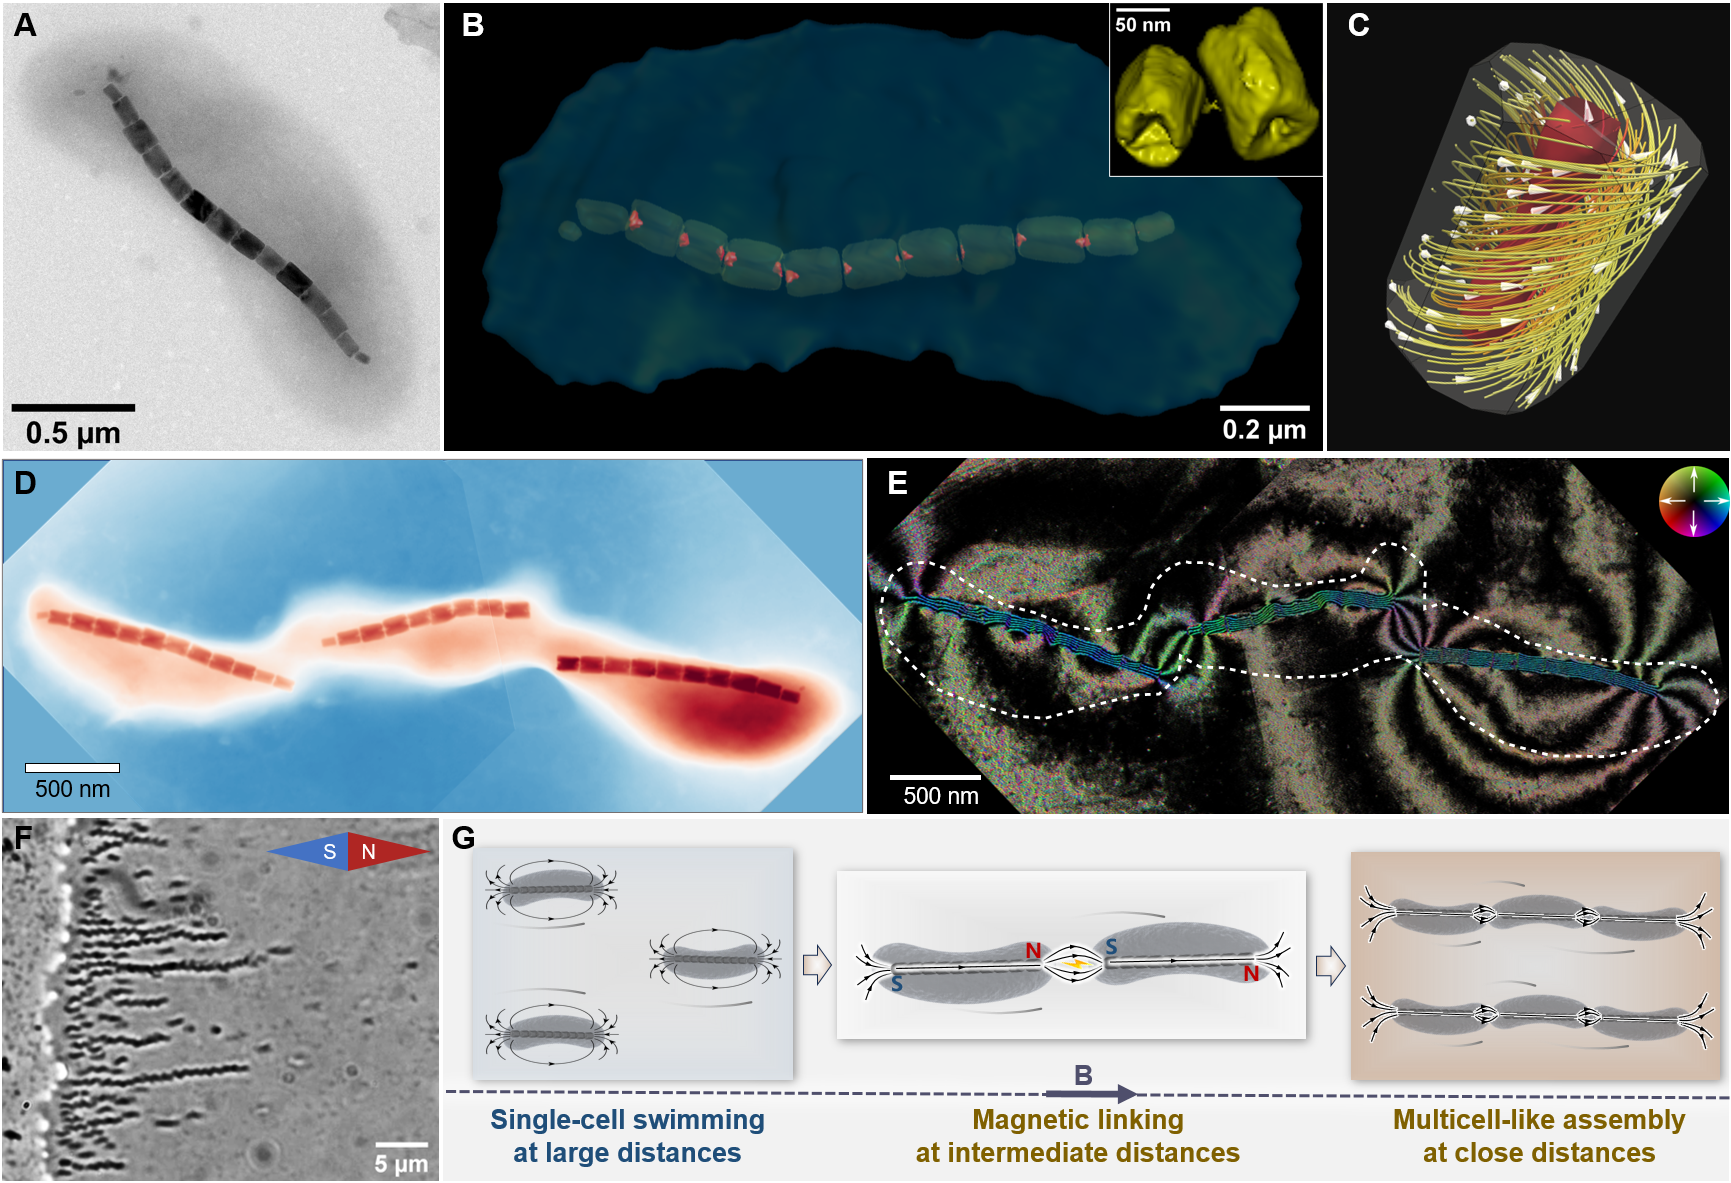
图 这幅图展示了趋磁弧菌WYHV-1的磁小体结构、磁性与磁场依赖的细胞间磁连接。(A)明场TEM图像显示WYHV-1胞内单链排列的棱柱状磁铁矿磁小体;颗粒平均长105.3 ± 23.5 nm、宽81.3 ± 19.9 nm,超过75%颗粒长90–150 nm、宽75–120 nm;(B)三维FIB-SEM重建和HAADF-STEM三维重建(右上插图)显示磁小体两端具有独特凹坑;(C)微磁模拟表明,长度超过90 nm的磁小体呈单涡旋态,而非理想单磁畴态;(D、E)离轴电子全息显示,紧密链内耦合使颗粒磁化沿链轴排列,链整体具强链平行单轴磁矩;相邻头尾排列细胞的磁小体链之间可发生静磁耦合。(F)悬滴实验显示,在外磁场作用下,WYHV-1细胞可头尾相连形成长细胞链;(G)外磁场中WYHV-1细胞对齐后磁连接示意图
一、趋磁细菌:从“活罗盘”到磁化石
趋磁细菌广泛分布于江河湖海沉积物的氧化还原过渡带,是研究生物如何感受和利用地磁场、如何参与有氧—厌氧过渡带物质能量循环的重要模式生物。它们起源古老,可能是地球上最早能够同时响应地磁场并合成纳米磁性矿物的生物类群之一。这类微生物在膜包裹的细胞器——磁小体内合成磁铁矿(Fe₃O₄)或胶黄铁矿(Fe₃S₄)纳米晶体,并将其排列成一条或多条磁链。单颗磁小体好比微小磁铁,成链后共同赋予细胞稳定磁矩,使细胞像“活罗盘”一样沿磁场方向取向。借助这种“降维搜索”,细胞可把寻找适宜营养和氧化还原条件的运动由三维缩减为主要沿磁力线的一维,从而提高趋磁—趋氧化学效率。
趋磁细菌还把生命过程与地质记录连接起来。细胞死亡后,部分磁小体可保存为磁化石。纳米尺度、较窄粒度分布、特定晶体形貌和残留链状结构,使它们成为稳定的剩磁载体和潜在生物标志矿物。因此,自20世纪六七十年代首次报道以来,磁小体生物矿化、磁学功能及化石保存一直是地球科学、微生物学和材料科学的交叉前沿。
经典模型认为,形貌规则、尺寸处于单磁畴范围的磁小体最有利于产生稳定磁矩。所谓单磁畴,是指颗粒内部磁矩大体同向,整颗晶体可近似看作一块均匀的小磁铁。然而,自然界中的磁小体并不都符合这一理想图景:有些颗粒偏大,有些排列弯曲或局部无序,还有些细胞似乎合成了超过基本导航需要的磁颗粒。这引出两个问题:具有非均匀磁化状态的颗粒能否继续支持稳定磁功能?磁小体链除了给单个细胞“指路”,能否参与细胞之间的物理组织?
二、未央湖发现 趋磁弧菌WYHV-1:单细胞细菌也能“手拉手”组成长链
研究团队从西安未央湖沉积物中发现了一类独特的单细胞趋磁弧菌,命名为WYHV-1。系统发育分析将其归入假单胞菌门(旧称变形菌门)α-变形菌纲,并提示其可能代表一个新的属级类群。通常情况下,WYHV-1以彼此独立的单细胞游动;当液滴中的细胞局部富集,并暴露于约0.1–1 mT外加磁场时,多个细胞会沿磁场方向首尾相接,形成约20–50 μm甚至更长的链状集合体。该外场约为当地地磁场的2–20倍。随外场增强,集合体趋于增多和变长,提示磁相互作用参与了连接过程。
这些集合体没有表现出明确的协同游动,多形成于液滴边缘,主要呈现磁场取向和细胞端部吸引。外磁场方向改变时,细胞长链整体翻转方向,而不像孤立WYHV-1细胞那样调换方向继续游泳。活细胞光学观察以及固定、干燥后的透射电镜分析均显示,集合体由结构完整的单细胞组成。因此,这一现象不同于由稳定细胞间结构维持的专性多细胞趋磁原核生物,也不同于丝状电缆细菌。研究将其解释为原本独立细胞之间的磁场依赖物理连接,而不是固定的多细胞生活史。通俗地说,这些单细胞会在特定实验条件下沿磁场“手拉手”,但现有证据尚不能说明它们在自然环境中经常形成长链。
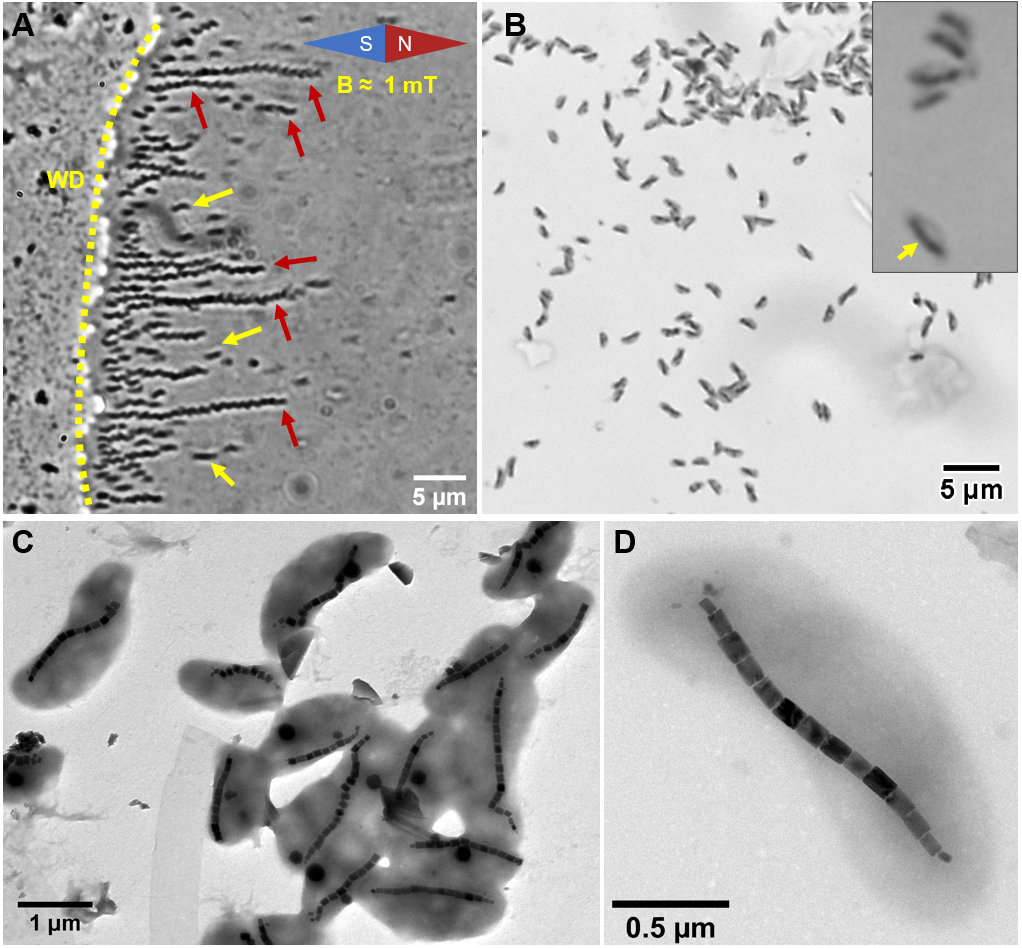
图1 WYHV-1的磁场定向串联行为与单细胞结构。(A)悬滴实验中,活体WYHV-1细胞在约1 mT外加磁场下首尾相接,形成延伸的细胞链(红箭头),部分细胞仍保持孤立个体(黄箭头)。细胞主要富集于水滴边缘(WD,黄色虚线);(B)磁富集细胞经结晶紫染色后仍呈独立的单细胞形态;部分细胞内可见微弱暗线(插图中黄箭头),与磁小体链的位置一致;(C)明场TEM图像显示完整的单细胞结构,每个细胞内含一条磁小体链;(D)代表性单个细胞TEM图像,显示弯曲的细胞形态以及沿细胞长轴紧密排列的磁小体链
三、两端长“酒窝”的大磁小体:不走寻常路的晶体设计
WYHV-1细胞长约1.3–2.9 μm、宽约0.5–1.0 μm;每个细胞含8–21颗磁小体,平均约14颗。磁小体为拉长棱柱状磁铁矿,沿细胞长轴紧密排列成单链,相邻颗粒间距仅约2 nm,形成一条高度有序的胞内“磁链”。
对1,725颗磁小体的统计表明,晶体平均长105.3 ± 23.5 nm、宽81.3 ± 19.9 nm;超过四分之三的颗粒长90–150 nm、宽75–120 nm。这一尺寸大于绝大多数已报道的趋磁细菌棱柱状磁小体,已接近甚至进入孤立磁铁矿颗粒易发生非均匀磁化的范围,为后续磁学分析埋下伏笔。
更特别的是,这些晶体两端具有明显凹坑,平均深度约11.0 ± 1.7 nm(n = 82),形似一对对称的“酒窝”。高角环形暗场扫描透射电镜(HAADF-STEM)、聚焦离子束扫描电镜(FIB-SEM)三维重构、HAADF-STEM三维重构和高分辨透射电镜(HRTEM)从不同观察方向共同确认,凹坑属于晶体本身,并非制样、投影或重构造成的伪影。晶体可近似为拉长六方棱柱,主要由六个{110}侧面和上下各一个{111}面限定,另有少量{100}和{111}晶面截角;末端凹陷可能与顶、底{111}晶面发育不完全有关。
同步辐射扫描透射X射线显微镜(STXM)结合X射线磁圆二色(XMCD)测量进一步确认,磁小体矿物为磁铁矿。部分细胞还含有富硫的电子致密颗粒,近边X射线吸收精细结构(NEXAFS)谱将其鉴定为零价硫,表明这些颗粒可能与细胞的硫氧化代谢有关。
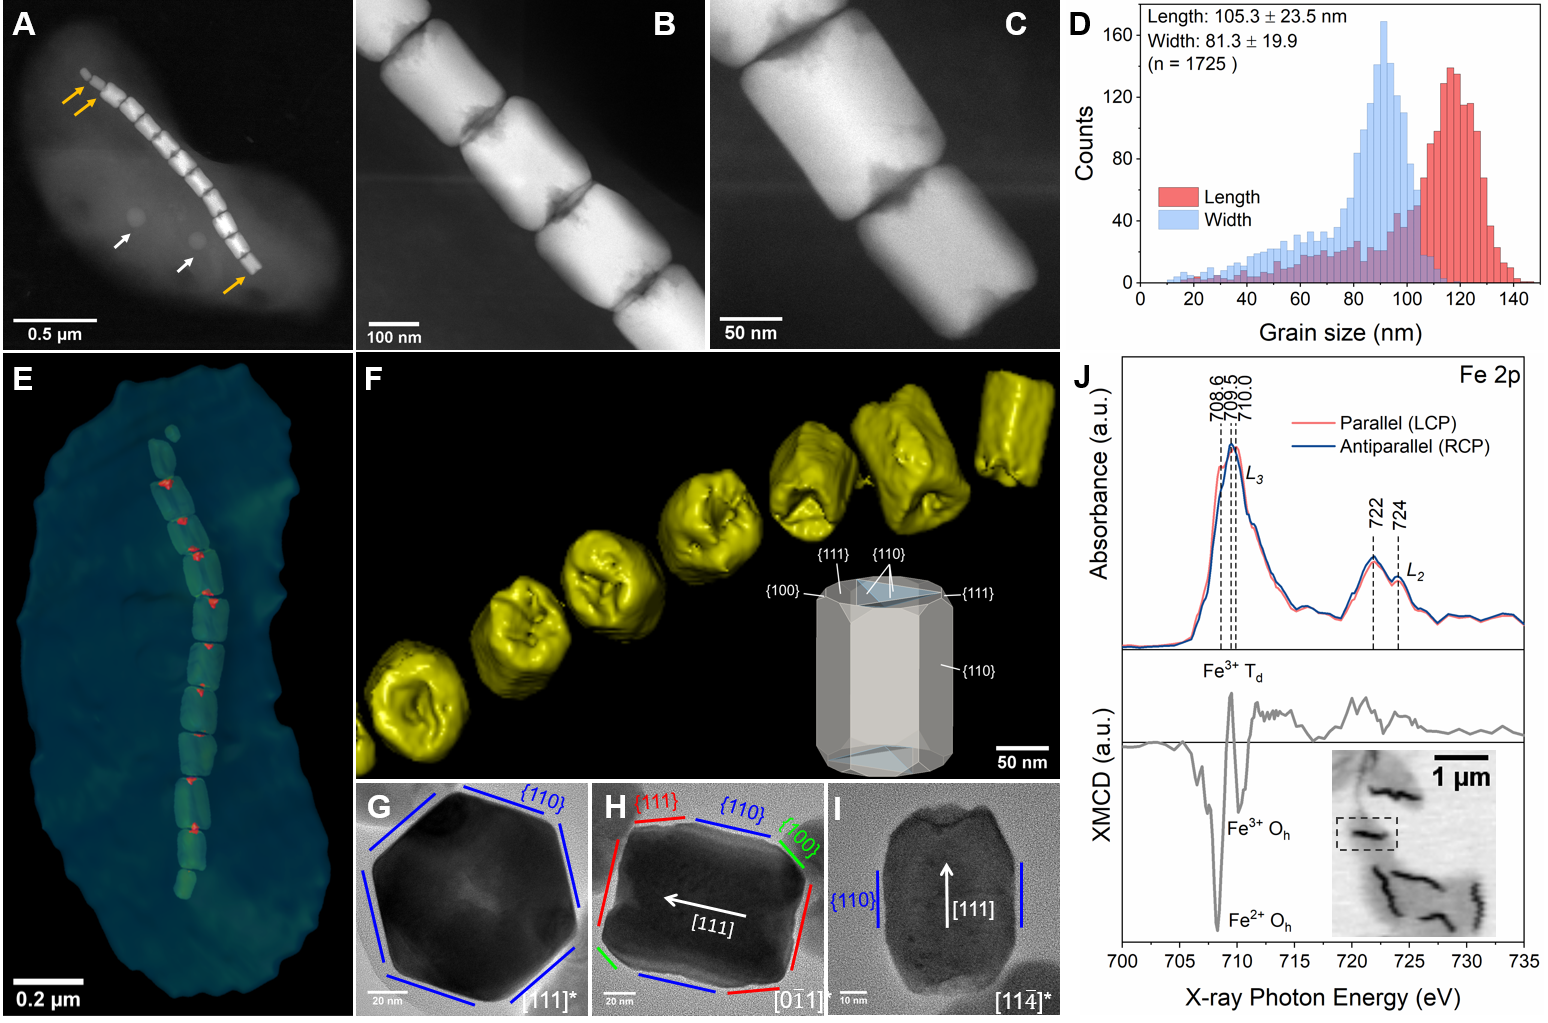
图2 WYHV-1磁小体磁铁矿的形貌与矿物学特征。(A)HAADF-STEM图像显示一条胞内磁小体链、两个含硫颗粒(白箭头)以及位于链端的较小磁铁矿颗粒(黄箭头);(B)紧密排列磁小体链的放大图。(C)链端颗粒的放大图;(D)1,725颗磁小体磁铁矿的尺寸分布。颗粒平均长105.3 ± 23.5 nm、宽81.3 ± 19.9 nm,超过75%的颗粒长90–150 nm、宽75–120 nm;(E)FIB-SEM三维重建显示磁小体沿链轴排列,单颗磁小体两端具有明显凹坑(红色);(F)7颗磁小体的HAADF-STEM三维重建,进一步显示其凹坑端形貌。插图为理想化晶体模型;颗粒以无序方式排列,仅用于清楚展示两端凹坑;(G–I)分别沿磁铁矿不同晶带轴获得的HRTEM图像,显示伸长棱柱状晶体结构及末端凹陷;(J)磁小体链区域的同步辐射STXM分析。上图为平行和反平行偏振条件下获得的Fe L2,3边X射线吸收谱,下图为两者之差得到的XMCD谱,确认磁小体矿物为磁铁矿
四、离轴电子全息:颗粒尺度单涡旋,链级强轴向磁矩
从尺寸上看,WYHV-1磁小体已接近甚至进入孤立磁铁矿颗粒容易发生非均匀磁化的范围。理论上,这类大颗粒可能不再保持均匀单磁畴,而出现涡旋等磁结构。为直接观察其纳米尺度磁结构,研究团队采用离轴电子全息。该技术通过记录电子束穿过样品后的相位变化,并分离磁性与静电贡献,重建样品的投影磁感应分布,相当于在纳米尺度“看见”磁矩的空间排列。
结果显示,完整磁小体链的主导磁信号大致平行于链轴,垂直分量约比平行分量弱一个数量级,说明整条磁链保持强烈的轴向磁响应。但在链端或局部塌缩的磁链中,单颗粒受相邻颗粒约束较弱,电子全息观察到闭合磁通图案以及约15 nm宽的窄涡旋核。此时,颗粒内部磁矩不再大体同向,而是围绕涡旋核发生空间卷曲,形成单涡旋样磁结构。换言之,单颗大磁小体并非总是一块磁化均匀的“小磁铁”;进入完整磁链后,颗粒间强耦合又使整个系统表现出稳定的沿链磁偶极矩。颗粒尺度的非均匀磁化与链尺度的稳定轴向磁响应,由此在同一体系中统一起来。
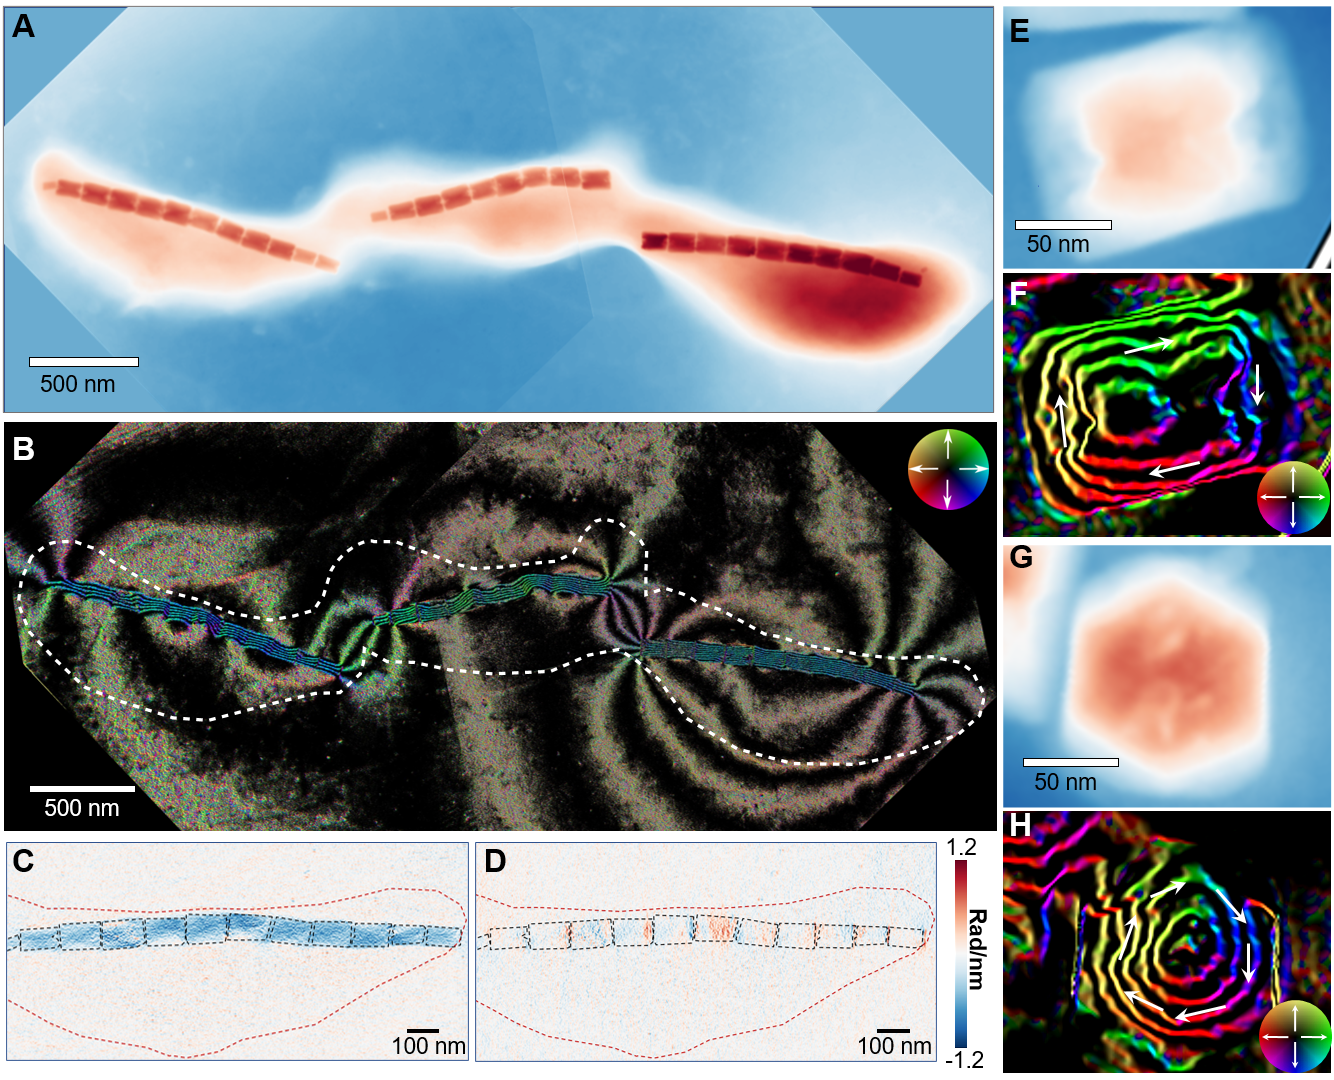
图3 离轴电子全息揭示颗粒尺度单涡旋磁化与链平行磁响应。(A)3个首尾串联细胞中有序磁小体链的平均内势图;(B)剩磁状态下的投影磁场分布。磁通总体平行于磁小体链轴,并显示首尾相接细胞之间的强磁相互作用;色轮表示磁场方向,等高线密度表示磁场强度;(C、D)由左侧细胞计算得到的磁场分量:(C)平行于磁小体链的Bx分量;(D)垂直于磁小体链的By分量。Bx总体较均匀,平均磁相位梯度约为0.45 rad nm-1;By较弱且呈局部非均匀分布,最大值约为0.04 rad nm-1;(E–H)受链内相互作用约束较弱的链端颗粒平均内势图(E、G)及磁场分布图(F、H)。从颗粒侧面和端部均可观察到闭合磁通及窄涡旋核,表明这些颗粒呈单涡旋样磁化。磁相位等高线间隔为π/5 rad,对应磁通量4.14 × 10⁻¹⁵ T·m2
五、微磁模拟:尺寸依赖的磁状态转变与链内耦合的“驯服”效应
微磁模拟是连接实验观察与理论预测的桥梁。研究团队依据实测颗粒尺寸、形貌和链几何形态建立模型,从单颗粒到完整磁链逐级模拟其磁化行为。
单颗粒模拟显示,尺寸是决定磁状态的关键因素:长度约40–85 nm的颗粒处于单磁畴态,内部磁矩基本同向;长度约90–150 nm的较大颗粒多数转变为单涡旋态,涡旋核通常沿颗粒长轴排列,部分颗粒的涡旋核沿短轴排列。该结果与电子全息观察一致,说明大尺寸颗粒在孤立或弱约束条件下更容易形成非均匀磁结构,而非理想均匀磁化的“小磁铁”。
关键变化发生在颗粒成链之后。当颗粒以约2 nm间距紧密排列时,强链内静磁耦合显著抑制大颗粒内部的磁化卷曲,使多数链内颗粒趋向近乎均匀的“有效单磁畴样”状态,整条链由此获得强而稳定的沿链剩余磁矩。电子全息和微磁模拟相互印证:对WYHV-1而言,真正发挥功能的磁学单元不能只看孤立颗粒,而应看颗粒相互作用构成的完整磁小体链。换言之,单颗粒的“不完美”可被链级协同所弥补,链整体才是稳定磁响应的来源。
凹坑是WYHV-1鲜明的生物矿化特征,但其具体磁学功能仍未确定。采用相同尺寸和间距的非凹坑棱柱颗粒进行对照模拟时,完整磁链的总体沿链剩磁没有显著改变。由于研究尚未直接比较严格匹配的凹坑与非凹坑模型在链端杂散场和细胞间耦合能上的差异,目前不能把细胞串联归因于凹坑本身。凹坑如何形成、是否具有尚未识别的功能,仍需遗传学和仿生矿化实验进一步检验。
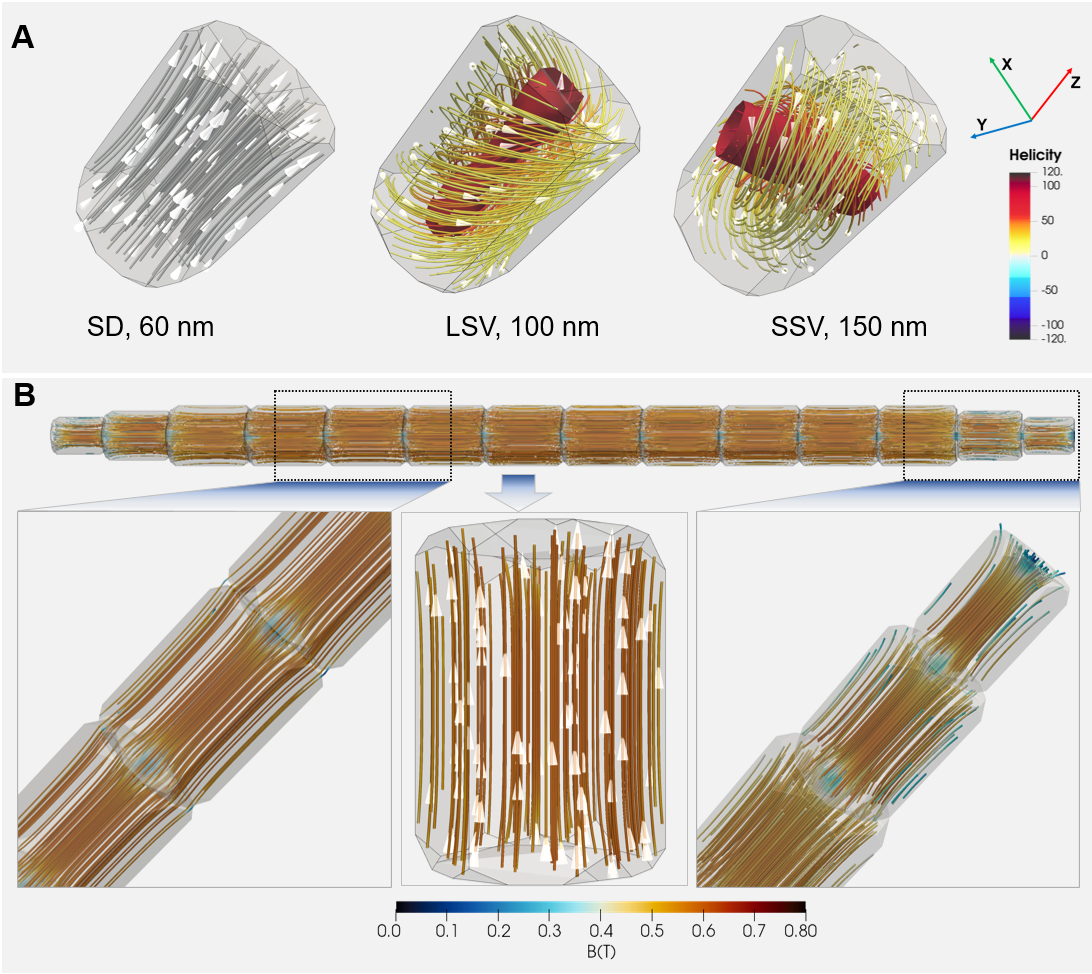
图4 微磁模拟揭示尺寸依赖的单磁畴—单涡旋转变及链级稳定磁响应。(A)3种代表性凹坑端磁铁矿颗粒的剩磁微磁结构。长60 nm的颗粒处于单磁畴(SD)态;长100 nm的颗粒处于单涡旋(SV)态,涡旋核平行于颗粒长轴(LSV);长150 nm的颗粒同样处于单涡旋态,但涡旋核平行于颗粒短轴(SSV)。色标表示去除z分量后的磁感应螺旋度。(B)WYHV-1磁小体链的剩磁状态。强链内静磁耦合使多数链内颗粒趋向以单磁畴样磁化为主,并使整条磁链形成强烈的链平行剩余磁矩;局部非均匀磁化主要保留在颗粒端部和磁链末端。插图为链内及链端代表性颗粒的放大图,下方中央插图显示链内单颗粒的微磁结构
六、链端杂散场如何让细胞首尾相连
为检验细胞间磁连接是否具有合理的磁学基础,研究团队建立了单链和头尾对齐双链模型。磁铁两端会向外泄漏磁力线,形成所谓“杂散场”;磁小体链端正是杂散场最集中之处。计算表明,链端磁感应强度随距离增加而衰减,但在100–1000 nm的模拟范围内仍高于当地地磁场强度(约4.5×10⁻⁵ T);两条磁链头尾耦合带来的静磁能收益也超过室温热扰动能kBT(约4.047×10⁻²¹ J)。由较大单涡旋颗粒组成的磁链,在中等距离上比完全由小型单磁畴颗粒组成的磁链保持更强耦合。
模型进一步提示,当两个活细胞相距约2000 nm,即接近一个细胞长度,并被外场调整为近似头尾排列时,链间磁相互作用仍可能足以抵抗一定程度的布朗扰动。由此,悬滴实验中的连接过程可作如下解释:外场先使细胞大致沿场对齐,磁链端部集中的杂散场再促进端对端吸引、连接与再连接。在这些实验条件下,磁小体链既是细胞内的“指南针”,也可成为传递细胞间磁力的物理结构。
需要强调的是,约2000 nm的作用距离来自模型推算,并非对活细胞间磁力的直接测量。它说明该机制在物理上可行,但不能单独证明自然环境中长细胞链普遍存在。
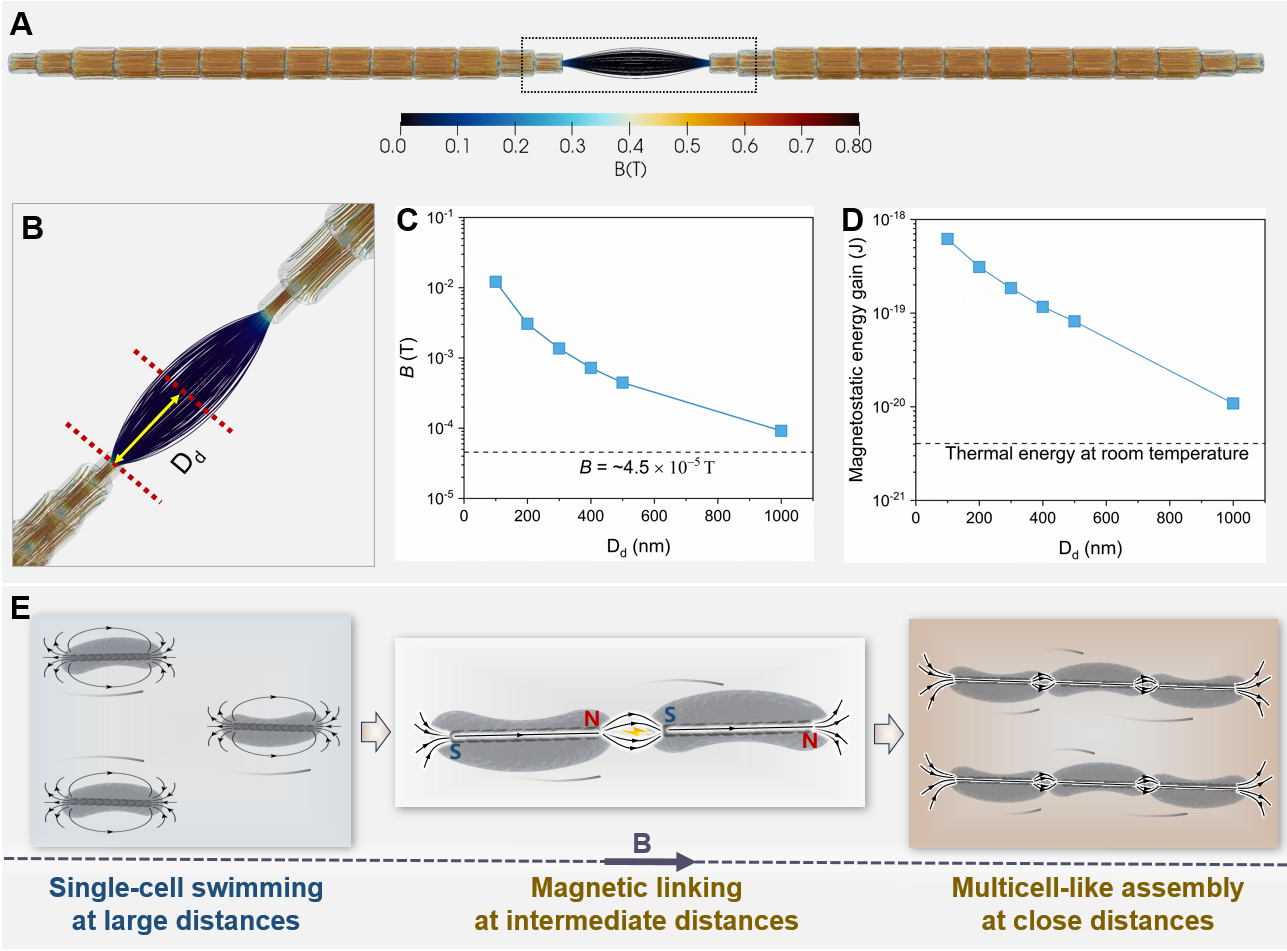
图5 两条首尾对齐磁小体链的微磁模拟与磁耦合。(A)两条由单涡旋颗粒组成、首尾对齐的磁小体链在剩磁状态下的微磁模拟;(B)A中黑色虚线框区域的微磁结构。两条磁链间距为400 nm,切片位于两链之间的中间平面,显示链间磁耦合;(C)双链系统中点处的最大磁感应强度B随半链间距Dd的变化。虚线表示当地地磁场强度,约为4.5 × 10⁻⁵ T;(D)双链系统的静磁耦合能增益随Dd的变化。该增益由双链模型与对应孤立单链模型之间的静磁相互作用能差定义;虚线表示室温热能;(E)外加磁场B使WYHV-1细胞大致对齐后,磁小体链端部的杂散场促进相邻细胞磁连接的示意图
七、跨尺度磁组织的科学意义与研究展望
趋磁弧菌WYHV-1的重要性,在于把三个尺度上的磁过程连接起来:在颗粒尺度,大尺寸磁小体可呈单涡旋样磁化;在磁链尺度,颗粒间强耦合把局部非均匀磁化整合为稳定的轴向磁矩;在细胞尺度,磁链端部杂散场可在特定外场和细胞密度下促进相邻细胞连接。这一“颗粒—链—细胞”跨尺度框架拓展了经典单磁畴模型:趋磁细菌并不要求每颗磁小体都处于理想均匀磁化的单磁畴态,大尺寸单涡旋颗粒仍可通过链级协同获得稳定的轴向磁响应。换言之,磁小体的功能评价尺度应从孤立颗粒扩展到完整磁链,甚至细胞间相互作用。这并非否定单磁畴颗粒的优势,而是提示我们:生物磁导航可能更像一套协同系统,整体配合比单个零件“完美”更重要。
该发现也为地质记录中带凹坑的棱柱状磁铁矿化石提供了现代生物学参照。此类颗粒偶见于海洋沉积物,过去常被归因于磁铁矿还原溶解等后期改造。WYHV-1表明,带凹坑的棱柱状磁铁矿可以由趋磁细菌胞内合成。但凹坑形貌本身仍不足以证明生物成因;判断古老样品中的候选磁小体,仍需综合晶体形貌、粒度分布、链状排列、矿物化学、磁学性质和沉积背景,不能把单一形貌特征作为诊断标准。
带凹坑磁小体链及细胞长链组装的生物学功能和生态学意义目前仍不清楚,但值得进一步探索。现有长链组装主要在外加磁场、较高局部细胞密度和悬滴边缘条件下观察到;自然沉积物中的细胞丰度、取向、水动力、孔隙几何和化学梯度都可能限制端对端连接。若类似细胞长链能在自然环境中发生,可能影响细胞在氧化还原界面附近的取向和局部滞留,改变其与沉积物颗粒、生物膜或捕食者的相互作用,甚至可能承担类似电缆细菌的氧化还原代谢功能。未来需要在接近地磁场强度的模拟体系中直接观察趋磁细菌活细胞,并通过磁学—电化学—化学耦合实验,判断磁连接是否具有真实的生物学或生态功能。