|
刘沛余,吕永新,张宇,王寅炤,朱珂磊,曹朝阳,董良,肖湘,潘永信,李金华*.Extensive horizontal gene transfer drives microbial adaptation and diversification in Kermadec Trench hadal microbiomes[J] .Nature Communications, 2026. DOI:10.1038/s41467-026-77994-z. |
在近万米的海底,高压、低温、营养匮乏和剧烈变化的氧化还原条件,共同构成了地球上最严酷的生命环境之一。微生物如何获得在这里生存的“本领”?除了依靠自身基因的逐渐变异,它们还可能从远缘类群获得已经形成的功能基因,快速扩展碳源利用、抗氧化和细胞膜调节等能力。
中国科学院地质与地球物理研究所李金华研究员团队与上海交通大学张宇研究员团队合作,对克马德克海沟近万米水深沉积物开展宏基因组、原位固定样品的宏转录组和系统发育分析,发现海沟微生物基因组中保存着广泛的跨门乃至跨域远缘水平基因转移记录。这些外源基因与活性氧清除、芳香化合物降解、脂肪酸和血红素合成等深渊适应功能密切相关,并显著参与部分基因家族的多拷贝扩增。
研究还发现,趋磁细菌和病毒可能是深渊基因交流网络的重要参与者。趋磁细菌沿地磁场方向运动,可能增加细胞与其他微生物、环境DNA和病毒颗粒的相遇机会,进而为已有的基因转移途径创造条件。不过,这一“地磁导航促进基因交流”的机制目前主要得到基因组、转录组和系统发育关联的支持,仍有待原位观测和受控实验验证。
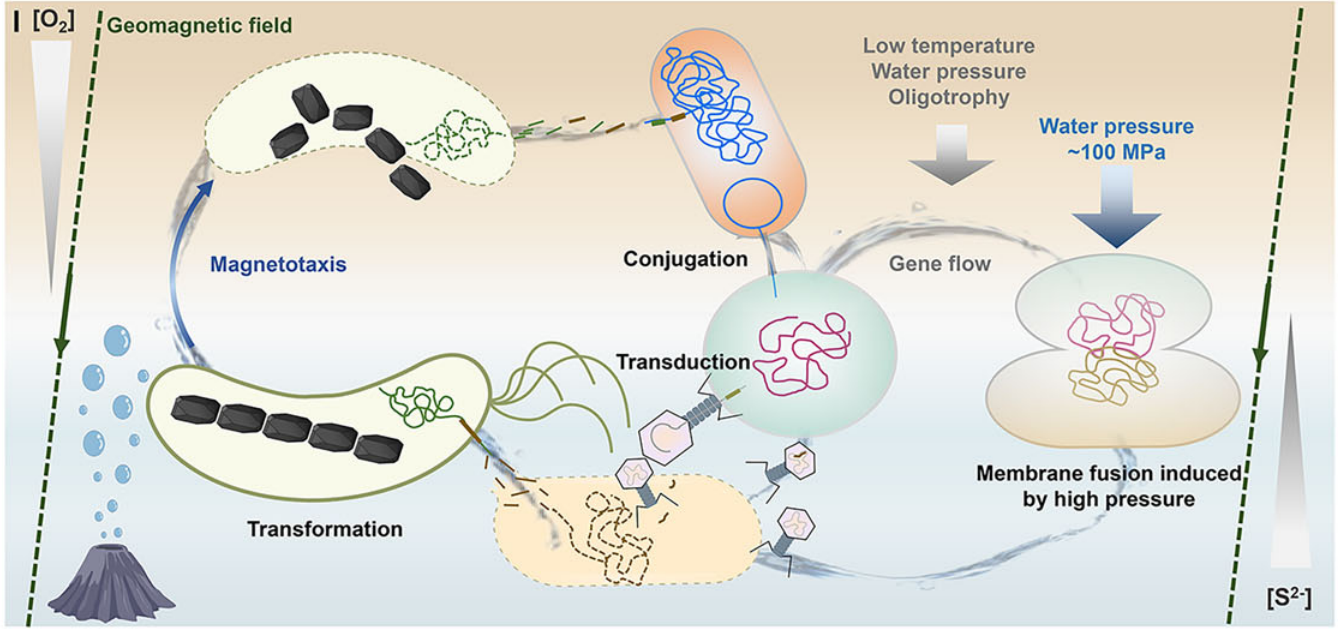
万米深渊微生物基因交流概念模型。微生物可通过自然转化、接合和病毒转导等途径交换遗传物质;趋磁运动可能增加不同微生物之间以及细胞与环境DNA、病毒颗粒之间的相遇机会。图中高压促进完整细胞膜融合并介导DNA交换的过程属于待检验假说,尚未获得原位直接证据
一、万米深渊中的生命挑战
通常将水深超过6000米的海域称为深渊带,主要分布在大洋海沟。克马德克海沟位于西南太平洋,研究站位接近10000米水深,静水压力约为100兆帕,相当于海平面大气压的近1000倍,温度则接近冰点。
高压和低温会影响细胞膜流动性、蛋白质稳定性及酶促反应效率,而有限的可利用有机碳又要求微生物以较低的能量成本维持代谢。与此同时,高压、低温和氧化还原变化可能加剧细胞的氧化胁迫。因此,深渊生命需要在膜结构维护、活性氧清除、能量获取和环境感知等方面形成相应的适应能力。
深渊沉积物并不是化学条件均一的环境。海沟地形能够汇聚下沉的颗粒有机物,微生物对氧的消耗又会在沉积物中形成明显的氧化还原分层。此前的原位观测表明,研究区域底层海水的氧浓度约为210微摩尔/升,氧向沉积物中的渗透深度约为6—9厘米。也就是说,在短短数厘米的沉积物内,可以同时存在含氧、低氧和缺氧微环境,栖息着具有不同代谢方式的微生物。
这种高度压缩的氧化还原梯度提出了一个重要问题:生活在不同微环境、亲缘关系相距甚远的微生物,能否通过基因交流“互通有无”?如果可以,这种跨越分类边界的基因获取是否参与了深渊微生物的环境适应和代谢分化?
二、在海底保存微生物的活动信息
研究团队依托“探索一号”科考船和“奋斗者”号载人潜水器,在克马德克海沟两个水深近万米的站位采集了9份0-10厘米深度的沉积物样品。样品采集后,利用专门设计的原位固定装置在海底加入RNAlater保存液,以尽可能保存容易降解的RNA,减少样品在回收过程中因减压和升温造成的转录信息变化。
宏基因组分析用于回答群落中“有哪些微生物、携带哪些基因”的问题,宏转录组则用于判断“哪些基因在采样时检测到了转录”。两者结合,可以同时认识深渊微生物群落的遗传潜力和原位活动状态。
研究共获得770个中、高质量宏基因组组装基因组,其中124个为高质量基因组、646个为中等质量基因组。这些基因组可归为300个原核生物物种,包括289个细菌物种和11个古菌物种,覆盖28个细菌门和3个古菌门。
与GTDB、全球海洋微生物基因组目录及已有深渊基因组数据比较发现,其中194个物种与参考序列的平均核苷酸一致性低于95%,约占全部重建物种的64.7%。这表明克马德克海沟沉积物中蕴藏着大量尚未被充分表征的微生物类群。
研究还从238086条候选病毒序列中聚类得到186496个病毒操作分类单元。约98%的病毒分类单元与所比较的主要病毒数据库序列未达到物种水平的相似性阈值,约87.3%尚无法可靠预测宿主。这些结果揭示,克马德克海沟不仅具有丰富的微生物多样性,还蕴藏着规模庞大的未知病毒资源。
需要指出的是,这些病毒分类单元来自环境序列重建和聚类,并不等同于逐一培养、分离和鉴定的病毒物种。
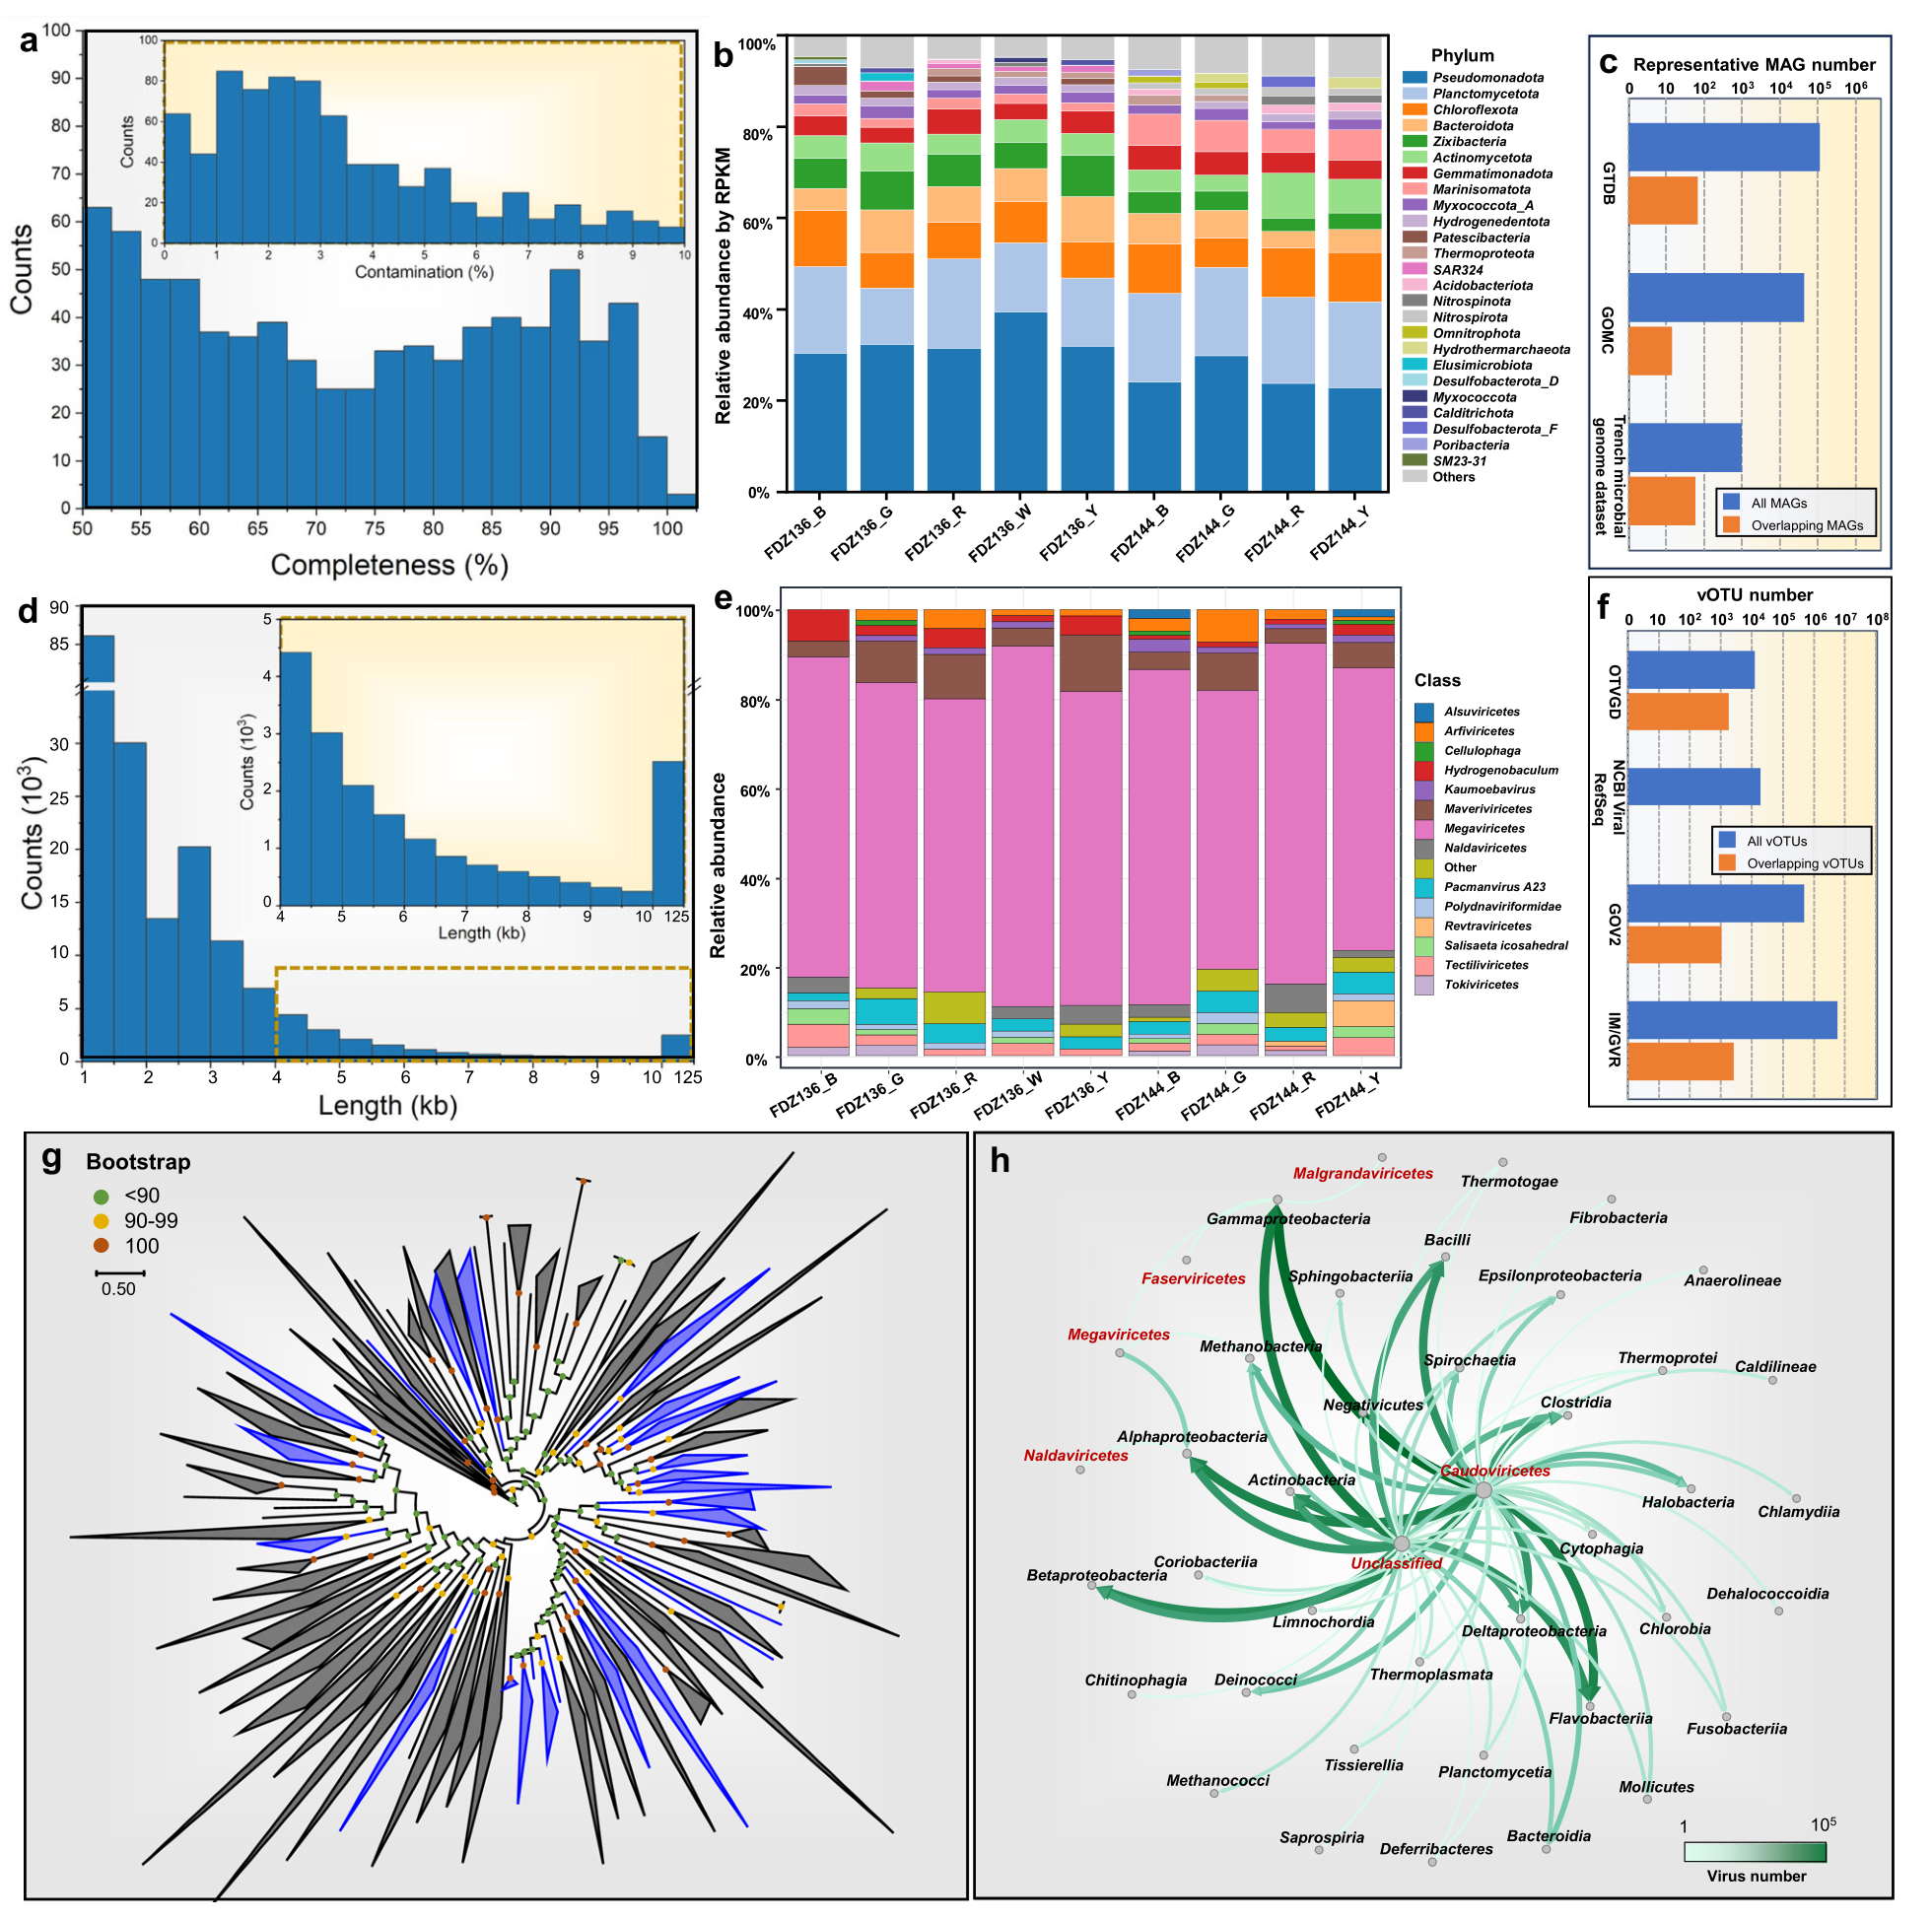
图1 克马德克海沟沉积物中的原核生物与病毒多样性。a—c展示宏基因组组装基因组的质量、群落组成及其与参考数据库的比较;d—f展示病毒序列长度、分类组成及其与已知病毒数据库的比较;g、h分别展示病毒系统发育关系和预测的病毒—宿主关联
三、发现广泛的远缘水平基因转移记录
水平基因转移是指遗传物质不经过亲代—子代的垂直遗传,而是在不同细胞或不同演化谱系之间传播。此次研究重点关注远缘水平基因转移,即distant horizontal gene transfer,简称DHGT,特别是跨越不同门、甚至不同域的遗传交流。
“门”是较高的生物分类等级。跨门基因转移意味着基因交流双方通常具有较远的演化关系。识别这类事件不能只依据某个基因与远缘类群序列相似这一现象,还需要判断该基因的演化历史是否明显偏离宿主的整体谱系关系,并排除基因组错误拼接、错误分箱和数据库采样不均等因素的影响。
研究团队以GTDB数据库1171个目级代表基因组为参照,针对信息存储与处理、细胞过程与信号传递、物质运输与代谢三类功能蛋白,分别建立跨门氨基酸相似性背景。在此基础上,综合分析候选基因在近缘和远缘类群中的分布、系统发育位置、所在基因组片段及邻近基因组成,构建了一套较为保守的DHGT识别流程。
在纳入HGTector2定量分析的121个物种中,研究识别出25158个DHGT候选蛋白,平均约占相应基因组编码基因的13%。其中,CG03、Desulfobacterota、Nanoarchaeota和SAR324等4个门的部分基因组中,外源候选基因比例超过30%。
另一套侧重分析研究群落内部转移关系的MetaCHIP流程,在500个宏基因组组装基因组中识别出925个远缘转移事件,涉及28个细菌门和2个古菌门。两种分析方法的参照范围和统计口径不同,但均支持克马德克海沟微生物群落中存在广泛的跨门、跨域基因交流记录。
宏基因组是由复杂群落中的短序列组装和分箱形成的,因此必须谨慎排除技术假象。研究团队采用独立流程重新进行基因组分箱,并比较序列覆盖深度、候选基因两侧基因的分类归属、长片段中的宿主基因比例及保守基因排列关系。研究还排除了1468个位于覆盖深度异常片段上的DHGT候选基因。
多项独立检验得到相互一致的结果,支持大多数DHGT候选基因位于相应宿主的稳定基因组片段中。尽管宏基因组分析仍难以完全消除组装和分箱的不确定性,这些稳健性检验显著增强了跨门基因转移解释的可靠性。
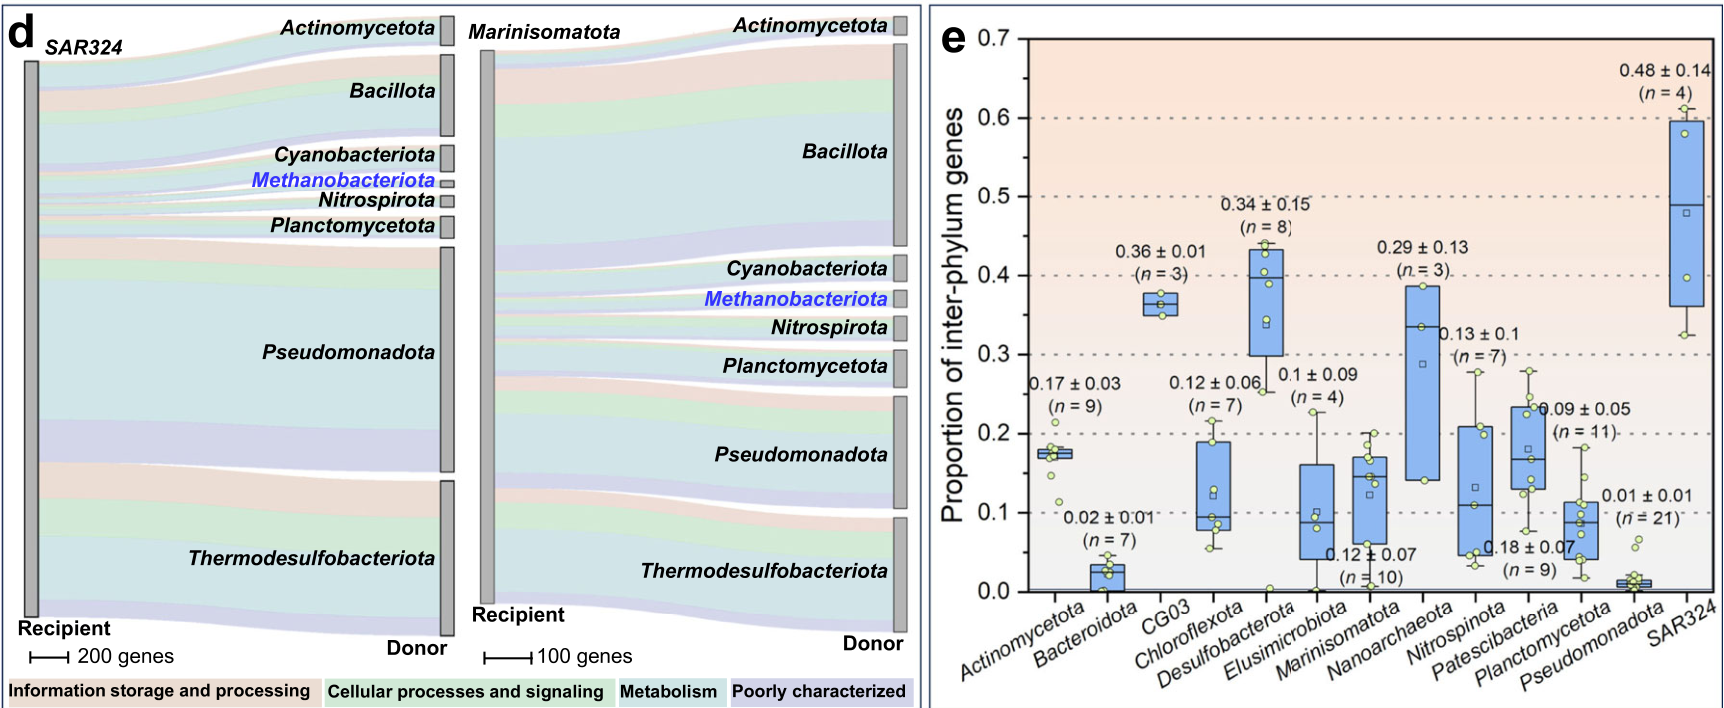
图2 远缘基因来源及其在不同微生物谱系中的分布。左侧展示代表性候选受体与潜在供体类群之间的关联,右侧比较不同门中所分析物种的DHGT候选基因比例。不同物种和谱系之间存在明显差异,部分谱系具有较高的远缘基因获取比例
四、跨门基因交流如何带来深渊生存本领
判断基因交流是否具有生态意义,关键在于这些外源基因能否参与细胞功能。研究发现,约59.5%的DHGT候选基因检测到了原位转录信号。虽然这一比例低于全基因组约69.7%的平均转录检出率,但仍说明相当一部分外源候选基因已经进入宿主的转录网络。
这些基因广泛涉及能量代谢、物质合成、环境感知和细胞结构维护,其中多类功能与深渊环境适应密切相关。
一是活性氧清除。高压、低温及氧化还原条件变化可能增加细胞的氧化胁迫。硫氧还蛋白还原酶等抗氧化相关基因,有助于维持细胞氧化还原平衡并减轻活性氧损伤。
二是难降解有机质利用。海沟沉积物中含有芳香族和其他难降解有机碳。相关降解基因可能帮助微生物拓展碳源范围,在能量受限环境中利用较难分解的有机物。
三是脂肪酸合成和细胞膜调节。细胞可以通过改变脂肪酸组成调节膜的流动性和稳定性,以缓冲高压、低温对膜结构和膜蛋白功能的影响。
四是卟啉和血红素合成。血红素是多种呼吸和氧化还原蛋白的重要辅基,相关基因可能参与深渊微生物电子传递和能量代谢系统的维持。
此外,DHGT候选基因还涉及一碳代谢、甲烷代谢、趋化、双组分信号系统和生物膜形成,可能帮助细胞感知环境变化、调节代谢并增强在颗粒表面的定殖能力。
这些功能注释和转录证据将“外源基因获取”与“深渊环境适应”联系起来。不过,检测到转录并不等同于已经证明相应蛋白具有特定生理作用。每一类候选基因的实际功能贡献,仍需要培养、基因操作或生化实验进一步验证。
五、水平转移参与适应性基因家族扩增
研究进一步分析了硫氧还蛋白还原酶、芳香化合物降解相关异构酶和一氧化碳脱氢酶三类代表性基因。它们分别参与氧化还原调节、芳香化合物利用和一碳代谢。
这些基因在部分深渊微生物基因组中具有2—28个拷贝,而所比较的近缘非深渊类群通常仅有0—5个拷贝。约97.4%的相关基因检测到了转录信号,表明这些扩增基因在采样环境中多数处于转录活动状态。
系统发育分析显示,约22.5%的扩增案例主要与门内基因复制或门内转移有关,约46.7%可以明确归为跨门获取,另有部分案例同时具有门内扩增和跨门获取的复杂历史。
这说明水平基因转移并不只是为细胞“增加一个新基因”。它还可能与基因复制共同作用,重塑整个基因家族。多个来源或多个拷贝的功能基因,可以增加代谢系统的冗余性、表达调控空间和底物利用范围,为微生物应对变化的氧化还原条件和资源供给提供遗传基础。
从这一意义上说,DHGT能够使微生物跨越缓慢的逐位点突变过程,较快获得已经形成的功能模块。但这并不否定自然选择:水平转移产生新的遗传组合,而环境选择决定哪些外源基因能够被保留、扩增并整合进宿主的代谢网络。
六、趋磁细菌可能成为跨微环境基因交流的“移动节点”
趋磁细菌为理解深渊基因交流提供了一个独特切入点。这类微生物能够在细胞内形成由磁性矿物纳米晶体组成的磁小体,并将磁小体组织成链,使细胞获得沿磁场方向取向的能力。趋磁性通常与趋氧、趋化等反应共同作用,帮助细胞在水体或沉积物的氧化—缺氧过渡带寻找适宜的生存位置。因此,地磁场不仅为趋磁细菌提供方向信息,还可能通过影响细胞运动轨迹,间接改变微生物之间以及细胞与环境DNA、病毒颗粒之间的相遇机会。
研究从未经磁富集的深渊沉积物宏基因组中重建出33个携带磁小体基因簇的基因组,代表分布于9个细菌门的22个候选趋磁细菌物种。其中,Actinomycetota和CG03的候选类群拓展了目前所知趋磁细菌的系统发育范围。
在22个候选物种中,21个物种的核心磁小体基因均检测到协调的转录信号,表明相应磁小体生物矿化系统可能处于活动状态。另一个Actinomycetota候选基因组未检测到磁小体基因转录,因此其对应微生物是否能够形成磁小体和表现出趋磁行为仍有待确认。
磁小体基因簇具有相对保守的核心骨架,但附属基因组成和局部排列顺序存在差异。磁小体基因树与宿主全基因组物种树之间也出现拓扑不一致。基因重复—转移—丢失分析进一步支持Planctomycetota、Elusimicrobiota和CG03等类群之间可能发生过多次磁小体基因模块交换。
这些结果表明,深渊趋磁性的演化可能同时受到垂直遗传、基因丢失、基因重组和水平转移的影响。但是,现有宏基因组证据无法确定每一次磁小体基因转移发生的具体时间和环境,也不能证明这些转移一定发生于当前采样的海沟沉积物中。
值得注意的是,24个候选趋磁细菌基因组仅占样品微生物相对丰度的约3.56%,却贡献了MetaCHIP所识别DHGT事件的约10.4%。在22个候选趋磁细菌物种中,19个物种共携带4379个DHGT候选基因,约占HGTector2分析所得DHGT基因库的17.4%。这些基因主要涉及脂肪酸代谢、芳香化合物利用、能量代谢、趋化和环境响应。
这些结果显示,候选趋磁细菌与DHGT之间存在明显的统计关联,但17.4%并不意味着已经证明这些基因转移由趋磁性直接介导。基于读段映射的另一种丰度口径估计,归入“趋磁细菌相关相遇”的DHGT丰度约占12%。两组数字反映的统计对象不同,不能相互替代。
研究团队据此提出:趋磁细菌沿地磁场方向在氧化还原过渡带运动,可能增加其与好氧、兼性厌氧和厌氧微生物,以及环境DNA和病毒颗粒相遇的机会,从而放大自然转化、接合或病毒转导等已有基因转移途径的作用。
换言之,地磁场提供的是细胞运动的方向信息,真正完成遗传物质转移的仍是DNA摄取、接合或病毒转导等分子机制。趋磁细菌可能由此成为连接不同氧化还原微环境的“移动节点”。
这一模型是论文最具原创性的科学假说之一,但目前仍属于相关性推断。氧化—缺氧界面本身会压缩不同微生物的空间分布,提高细胞共存和接触概率,因此尚不能排除生态共现与共同环境选择等其他解释。
研究还在48个非趋磁候选物种中发现了多个分散存在的磁小体核心基因同源物,部分基因具有较高的转录水平。但携带这些同源基因并不意味着宿主一定能够形成磁小体。MamB、MamM等同源蛋白可能参与铁运输,MamE类蛋白酶也可能承担蛋白质周转等其他功能。这反映出水平传播的分子元件进入不同宿主后,可能被重新利用并承担新的细胞功能。
七、病毒与多种分子途径共同构成基因流网络
病毒是微生物水平基因转移的重要媒介。研究发现,深渊病毒基因中存在大量与细菌和古菌同源的序列,相关功能涉及DNA复制和修复、抗氧化、硫代谢、核苷酸代谢及生物膜调控。
约41.7%的可注释病毒基因检测到了原位转录信号,包括病毒衣壳组装、宿主裂解、溶原性转换及DNA整合相关基因。这表明相当一部分病毒在深渊沉积物中具有转录活动。部分病毒编码蛋白在系统发育树上与来自不同细菌门的同源蛋白紧密聚类,也支持病毒与宿主之间存在复杂的基因交流。
研究将DHGT候选基因定位到可移动遗传元件后,发现533个候选基因位于前病毒区域,约占相应DHGT候选基因的2.1%,与病毒介导的转导相符;另有68个候选基因位于质粒或Ⅳ型分泌系统相关区域,约占0.27%,与细胞接触和接合转移相符。
此外,294个物种携带pilA、pilQ、comEA和comEC等与Ⅳ型菌毛和环境DNA摄取有关的基因,并检测到了相应转录信号,为深渊环境中的自然转化提供了潜在线索。
需要注意的是,这些比例只反映能够根据基因组位置追踪到的部分候选路径,不能解释全部DHGT事件。不同机制也可能依次或共同参与同一次基因传播过程,因此不能简单地把这些比例视为彼此完全独立、互不重叠的组成。
趋磁运动与上述分子途径的作用层级也不相同。趋磁运动可能改变细胞、病毒和环境DNA的相遇概率,而遗传物质能否真正进入宿主并被稳定保留,还取决于自然转化、病毒转导、接合以及宿主选择等过程。将生态尺度的“相遇”与分子尺度的“转移和整合”联系起来,才能完整理解深渊基因交流网络。

图3 深渊远缘基因交流的生物学线索与潜在物理影响。a—e展示病毒基因的功能和系统发育关联;f展示DNA摄取相关基因的分布与转录;g—j展示候选趋磁细菌相关DHGT基因的功能与谱系关系;k为基于读段映射的群落组成及候选途径丰度分析;l为综合概念模型。趋磁运动促进基因交流以及高压促进细胞膜融合的因果作用,仍需直接实验验证
八、科学意义、研究边界与展望
这项研究表明,克马德克海沟微生物基因组中保存着广泛的远缘水平基因转移记录,相关基因主要涉及抗氧化、碳源利用、能量代谢和细胞结构维护等功能。深渊微生物的适应能力,不仅取决于单个物种的基因组成,也受到不同谱系之间基因流动的影响。
从进化角度看,在选择压力强、能量供给有限的环境中,微生物可以通过获取功能模块或代谢通路组件,较快形成新的遗传和代谢组合。这并不否定达尔文式进化:DHGT提供遗传变异,自然选择决定外源基因能否被保留、扩增并整合进宿主网络。研究由此揭示了微生物进化的网络化、模块化和非严格树状特征。
从深渊生物学角度看,海沟并非静止、贫瘠的“生命边界”。海沟地形能够汇聚颗粒有机物,并在厘米尺度内形成强烈的氧化还原梯度,为病毒、环境DNA和不同代谢类型微生物的共存与接触创造条件,使其可能成为物质转化和基因交流较为活跃的微环境。
从生物地磁学角度看,这项研究将地磁场的潜在生物效应从细胞导航和元素循环拓展到群落连接与微生物进化。地磁场可能通过引导趋磁细菌在不同氧化还原微环境之间运动,改变细胞、环境DNA和病毒颗粒的相遇机会。若这一机制得到直接验证,将有望形成“地磁场—磁小体—细胞运动—群落连接—基因流动—生态适应与进化”的新研究方向。
研究获得的18万余个病毒操作分类单元中,约98%与现有主要数据库中的序列未达到物种水平相似性阈值,大部分尚无法可靠预测宿主。这些病毒及其携带的代谢和调控基因构成了重要的深海遗传资源库,可能包含新的高压适应酶、氧化还原蛋白、难降解有机质代谢酶及病毒—宿主调控元件,但其功能和应用潜力仍需实验验证。
需要强调的是,样品仅来自克马德克海沟两个站位,且缺少采用相同流程分析的非海沟对照,因此尚不能判断深渊环境中的DHGT是否比其他生态系统更频繁。基因组序列也无法确定每次转移发生的时间和地点。短读长组装和分箱仍存在一定不确定性,尽管研究已通过多种独立方法进行了稳健性检验。
同样,磁小体基因簇及其转录信号只能支持“候选趋磁细菌”的判断,不能替代磁小体成像、磁性测量和趋磁行为验证。趋磁细菌富集DHGT基因揭示的是统计关联,尚不能证明趋磁运动直接导致基因转移。高压促进完整细胞膜融合及DNA交换也仍属于待检验假说。
未来可结合沉积柱精细地球化学测量与分层多组学分析,检验氧化还原梯度与基因交流的关系;利用原位保压培养、磁场操控、单细胞追踪和供体—受体标记,直接测试趋磁运动是否提高基因转移概率;借助长读长和单细胞测序,解析可移动遗传元件与宿主之间的完整联系。同时,将相同分析流程应用于其他海沟和非海沟沉积物,有助于判断这些模式的环境特异性与普遍性。
总之,从万米深渊的环境筛选,到地磁导航下的细胞运动,再到跨越门类的基因共享,这项研究描绘了一幅相互连接的深渊生命图景:微生物可能作为基因共享网络中的节点,通过获取、保留和重新组合外源功能模块,扩展代谢潜力并促进生态适应与演化分化。万米深渊练本领,地磁导航或牵线;微生物跨门换基因,共享模块促创新。其中,“跨门换基因”是获得多层次证据支持的核心发现;“地磁导航或牵线”则是具有原创性、但仍待直接验证的机制假说。该研究为理解深渊生命的适应与演化,以及地磁场可能产生的生态—进化效应,提供了新的科学框架。